Milano Sementi sta investendo molto sia nella ricerca di nuove sementi che nello sviluppo di un vero e proprio polo di ricerca genetica applicata al riso. Va in questa direzione la collaborazione tra Eugenio Gentinetta, socio Mise, e la ricercatrice Chiara Pavan, che firmano questo articolo in cui si analizzano le conseguenze di una scoperta cinese. E’ il primo di una serie che vi proporremo per fare luce sulle nuove frontiere della genetica risicola.
L’IMPATTO DELL’APOMISSIA SINTETICA (di Eugenio Gentinetta e Chiara Pavan)
L’analisi del lavoro del gruppo di ricerca di Chen e colleghi sull’apomissia sintetica ad alta fertilità nel riso evidenzia una segnalazione scientifica di valore straordinario, che tocca direttamente il cuore della biologia della riproduzione e della ricerca genetica applicata alle colture cerealicole.
Il punto di svolta risiede nel superamento del principale collo di bottiglia che finora aveva bloccato l’impiego dell’apomissia: la bassa fertilità della pannocchia. Negli esperimenti precedenti, pur riuscendo a bypassare la meiosi e a stimolare lo sviluppo dell’embrione senza fecondazione, il numero di semi vitali per pianta rimaneva troppo basso per un impiego produttivo.
LIMITE SUPERATO
Questo limite è superato grazie all’integrazione del sistema MiMe, ovvero Mitosis instead of Meiosis, che letteralmente significa trasformare la mitosi al posto della meiosi. In natura, la meiosi è la divisione cellulare che dimezza il corredo genetico per creare i gameti e mescolare i geni dei genitori.
Con la tecnologia MiMe, attraverso la disattivazione mirata di tre geni specifici, la cellula della pianta evita il rimescolamento e la riduzione genetica, producendo cellule riproduttive diploidi, cioè con il corredo genetico completo e identico a quello della pianta madre.
SISTEMA MiMe
Nello specifico, i tre geni disattivati nel sistema MiMe svolgono ruoli cruciali nella divisione cellulare. Il gene SPO11-1, il cui nome deriva dall’inglese Sporulation-deficient 11, è l’interruttore molecolare che produce le rotture a doppio filamento del DNA necessarie per scambiare i frammenti genetici tra i cromosomi durante il ricombinamento.
REC8 è il gene da Recombination 8, produce una proteina fondamentale per la coesione dei cromatidi fratelli, ovvero la struttura che tiene uniti i bracci dei cromosomi prima della loro separazione. Il gene OSD1, acronimo di Omission of Second Division 1, regola la transizione tra le fasi della meiosi e la sua disattivazione porta all’omissione della seconda divisione meiotica, garantendo la formazione di gameti con doppio corredo genetico.
GENE BBM1
A questo meccanismo si unisce l’azione del gene BBM1, chiamato Babyboom1.
Babyboom fa riferimento proprio alla capacità del gene. Quest’ultimo codifica per un fattore di trascrizione, di innescare una rapida e spontanea proliferazione cellulare per avviare l’embriogenesi. La sua attivazione direttamente nell’ovulo non fecondato permette di far scattare la partenogenesi, cioè lo sviluppo dell’embrione senza l’intervento del polline maschile.
L’ottimizzazione del promotore di questo gene risolve definitivamente la criticità della fertilità, consentendo alle piante ibride di produrre semi clonali con una resa e un tasso di fertilità normali ed elevati.
CONSEGUENZE NELLA RICERCA SUGLI IBRIDI
La pubblicazione ha suscitato un vivo dibattito nella comunità scientifica internazionale.
Nelle discussioni tra esperti emergono considerazioni sulla costante ed evidente leadership della ricerca internazionale nell’anticipare e dominare i settori di punta delle biotecnologie agrarie. Qui c’è un immediato interesse da parte dell’intera rete dei genetisti del riso.
Dal punto di vista applicativo e genetico, la possibilità di fissare l’eterosi per seme e semplificare la riproduzione degli ibridi sarà indubbiamente una grande opportunità per il futuro della risicoltura. Tuttavia, occorre sempre muoversi con molta cautela e tenere gli occhi ben aperti.
CLONI PERFETTI
Moltiplicare piante che sono dei cloni perfetti significa azzerare la variabilità genetica all’interno del campo.
Se da un lato questo garantisce una grande uniformità, dall’altro rappresenta un rischio enorme: di fronte all’arrivo di una nuova malattia, di un fungo o di un patogeno particolarmente aggressivo, non si rischia di perdere una singola pianta vulnerabile, ma l’intero appezzamento. Ciò avviene perché tutti gli individui condividono identiche debolezze.
La tecnologia è affascinante e promettente per gli anni a venire. Tuttavia, la salvaguardia della biodiversità e la resilienza del campo devono rimanere un punto fermo dell’attenzione agronomica.
TROPPO OMOGENEITA’ GENETICA FAVORISCE I PATOGENI
L’omogeneità genetica assoluta è una lama a doppio taglio: è fantastica sulla carta per la resa e la lavorazione industriale. Ciò nonostante in biologia la monocultura clonale su vasta scala ha sempre rappresentato un rischio enorme.
La storia dell’agricoltura ce lo insegna, guardando a quanto è successo alla banana Cavendish con la malattia di Panama, o alla peronospora della patata in Irlanda: nel caso in cui una popolazione è composta da cloni identici, manca del tutto la variabilità di popolazione .
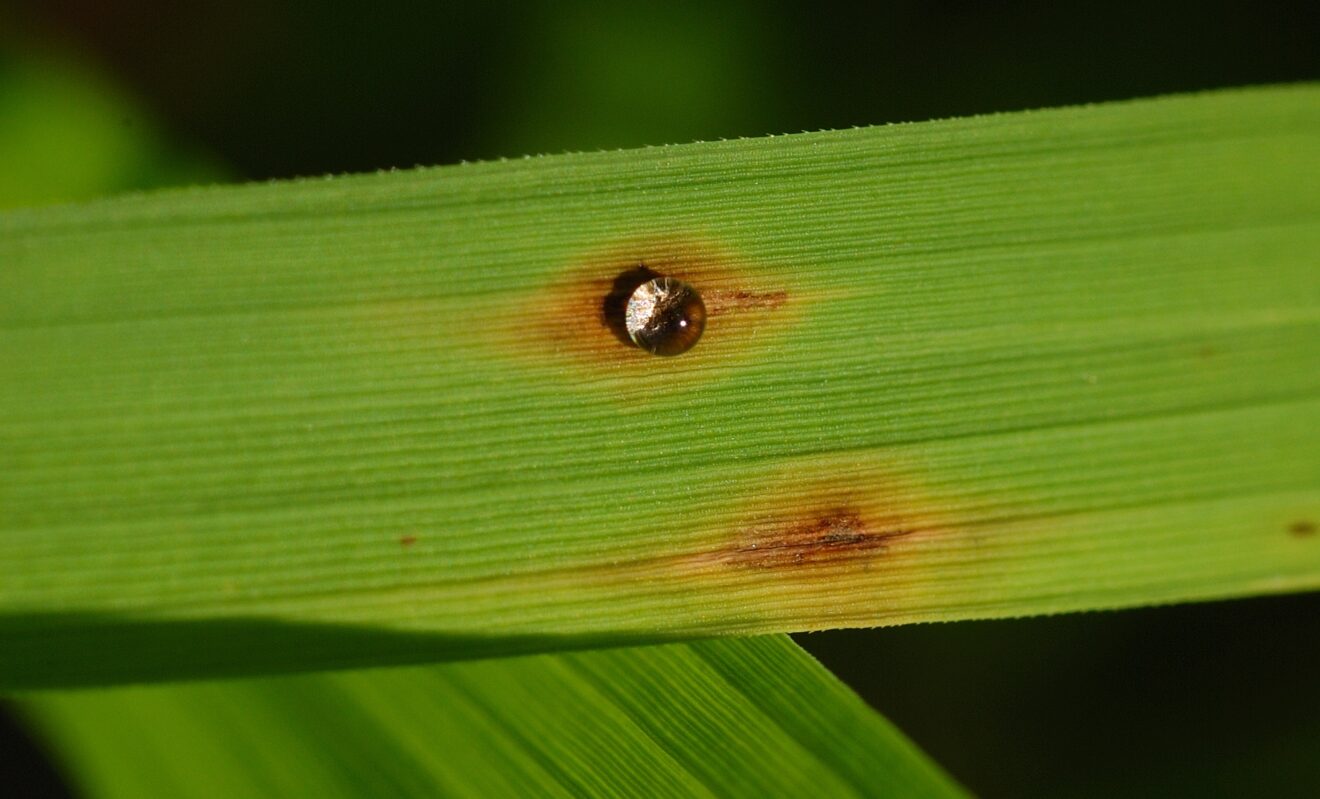
Se arriva un ceppo virulento di un fungo come la Pyricularia o un batterio aggressivo a cui quel clone non è resistente, non c’è una singola pianta nel campo in grado di sopravvivere o di fare da barriera, ed è perso l’intero raccolto. Autori: Eugenio Gentinetta e Chiara Pavan
Vuoi essere informato delle novità? Compila il modulo newsletter e whatsapp presente in home page. Se vuoi leggere ricette trovi tutto su http://www.risotto.us. Se coltivi anche grano leggi www.granoitaliano.eu